

海洋环境中的附着性大型生物污损会导致钢表面发生复杂腐蚀,在牡蛎/钢界面形成局部腐蚀,在苔藓虫/钢界面形成均匀腐蚀。硫酸盐还原菌(SRB)被认为参与了覆盖有大型生物污损界面的微生物影响腐蚀(MIC)过程。为了更好地理解海洋生物膜作为 MIC 过程中关键介体的作用,采用宏基因组学技术研究了微生物群落及其对大型生物污损覆盖的响应。与苔藓虫相比,牡蛎/钢界面形成的局部厌氧区刺激了 SRB 的生长,导致 FeS 含量增加和严重的局部腐蚀。发现 SRB Desulfovibrio 和 Desulfobulbus 以及与 SRB 相关的功能基因 dsr 含量增加,而与氧气相关的功能基因 coxC、ccoN、ccoO、ccoP 和 ccoQ 含量减少。 相比之下,没有大型生物污损覆盖的钢表面拥有最丰富的微生物群落,但经历了较轻的微生物影响腐蚀,表明微生物数量/多样性与促进钢铁腐蚀之间没有直接联系。
海洋污损生物是指附着在海洋设施表面的动物、植物和微生物的统称。根据体型大小,它们被分为微污损生物(微米级)和宏观污损生物(厘米级)。污损生物会对船舶、桥梁、石油平台和管道等海洋基础设施产生不利影响。
根据是否存在石灰质外壳,大型附着生物可分为软附着(如非石灰质藻类、海绵和海鞘等)和硬附着(如藤壶、牡蛎等)。研究发现,大型附着生物的附着会显著损害海上结构的完整性和性能。例如,具有石灰质外壳的大型附着生物,如牡蛎和藤壶,会导致海洋设施发生严重的局部腐蚀 。这种现象最常见的原因是大型附着生物的附着会在钢表面形成“生物限制层”。该层内部形成缺氧环境,而层外则氧气充足。氧浓度细胞的形成会加速大型附着生物与钢界面处的缝隙腐蚀。
然而,宏观污损与钢铁之间的界面形成了一个独立的生态系统。宏观污损分泌物的成分主要是蛋白质和多糖,这些物质创造了富营养化环境,促进了微生物的生长。Perme 等人发现,佛罗里达州水下钢桥桩的严重局部腐蚀与宏观污损和微生物引起的腐蚀有关。他们还发现,由宏观污损污染物形成的裂缝对硫酸盐还原菌(SRB)的生长和微生物腐蚀(MIC)的发展有显著影响。在宏观污损生物占据的封闭环境中,由SRB主导的MIC过程迅速发展。因此,为了研究宏观污损覆盖层影响的腐蚀,有必要通过考察界面腐蚀行为和微生物的丰度和多样性,建立微生物群落和宏观污损协同作用下的钢铁腐蚀机制。
一 宏观污损/钢界面的结构
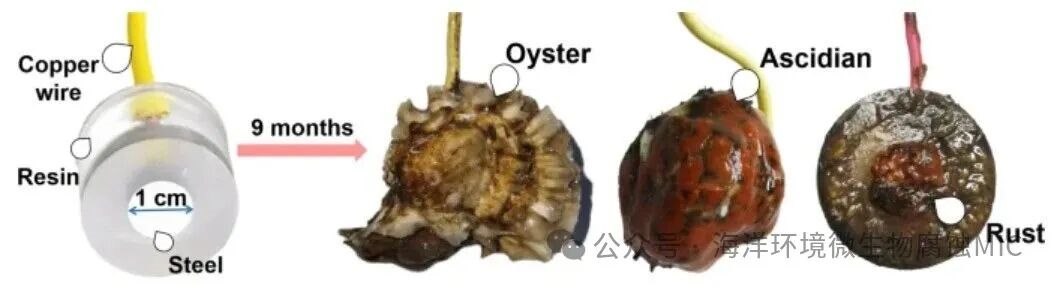
将钢样浸入海水中 9 个月。然后,在收集被污损的钢样后,去除覆盖的宏观污损生物。在牡蛎和苔藓虫覆盖的界面之间观察到不同的腐蚀类型。在牡蛎因壳体形状不规则而无法完全覆盖的区域观察到严重的局部腐蚀,而在被苔藓虫覆盖的污损钢表面观察到均匀腐蚀。
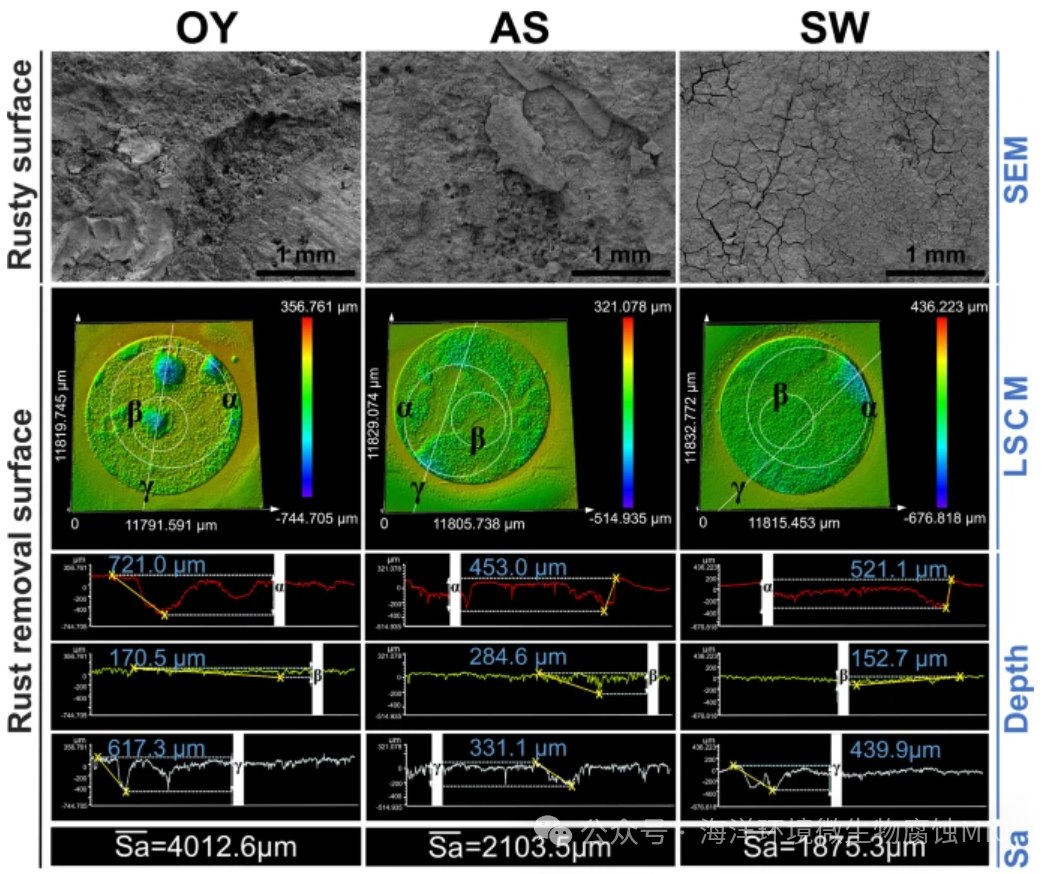
图一:界面腐蚀行为。
CLSM 结果显示,在去除锈层后,OY 试样的钢表面有显著破坏,存在明显的局部损伤和腐蚀间隙,而 AS 试样的钢表面相对均匀,无明显局部损伤。提取了腐蚀深度值的最大差异,OY 试样的最大腐蚀深度值为 721.0 μm,远大于 AS(453.048 μm)和 SW(521.1 μm)试样的值。还分析了平均粗糙度值,裸露钢表面的 Sa 平均值从大到小排序为:OY > AS > SW。认为大型污损生物覆盖影响了钢表面的粗糙度,促进了腐蚀坑的起始。然而,牡蛎石灰壳的覆盖环境形成的间隙进一步发展了这些腐蚀坑,导致严重的局部损伤和腐蚀。相比之下,海鞘覆盖促进的腐蚀坑似乎呈片状连接,显示出均匀腐蚀。
二 宏观污损/钢界面处的锈层
腐蚀产物的 XPS 全扫描显示,主要元素为 Fe、C、O 和 S。三个样品的Fe 2p高分辨率谱被分解为在 720.148、711.849、725.349,50、710.751 和 723.552 eV 处的峰,分别对应Fe0、FeOOH 2p3/2、FeOOH 2p1/2、Fe3O4 2p3/2 和 Fe3O4 2p3/2。在 OY-RU 和 AS-RU 样品中检测到 713.6 eV(FeS 2p3/2)处的峰,表明在宏观污损/钢界面处生成了 FeS。
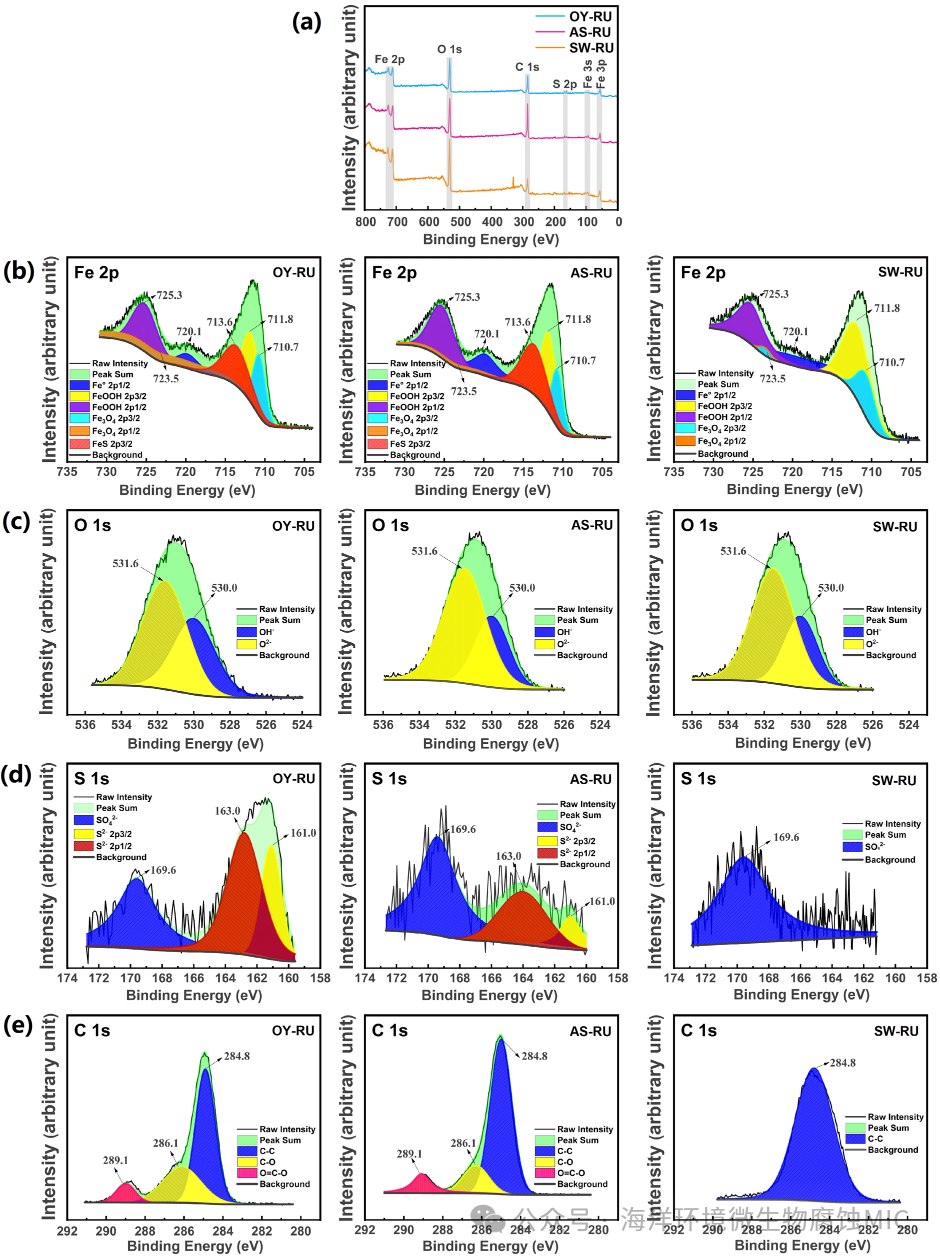
图二:九个月浸没后宏观污损/钢界面处形成的锈层 XPS 光谱。
C 1s 的高分辨率光谱显示出三个峰:羧酸根(O=C–O)位于 289.1 eV,C–C 键位于 284.6 eV,C–O 键位于 286.1 eV。C–C 可能来自脂肪族碳,而 C–C 则来自与多糖或肽/蛋白质中的氧单键相连的碳。羧酸根(O=C–O)可能来自 EPS,这是有机酸积累的证据,有机酸是生物膜中常见的细菌代谢产物。产生的EPS和FeS表明,硫酸盐还原菌可能参与了宏观污损/钢界面处的MIC过程。
使用傅里叶变换红外光谱仪(FT-IR)对锈层进行了表征,并对所得光谱进行了分析,存在磁铁矿 Fe3O4、GR(SO42−)、针铁矿γ-FeOOH、水铁矿β-FeOOH、黄铁矿α-FeOOH 和硫化铁 FeS。
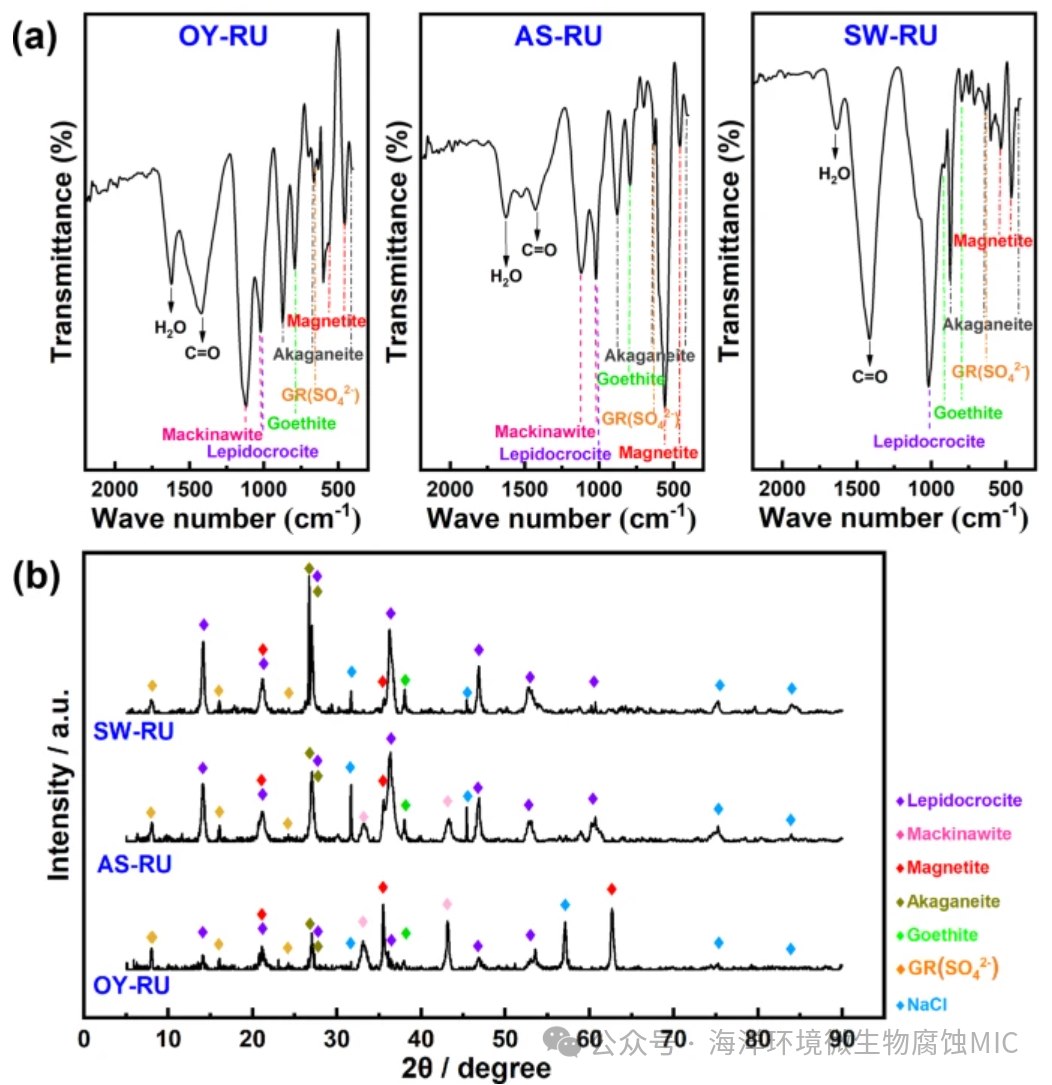
图三:a 宏观污损/钢界面处九个月浸泡后形成的锈层傅里叶变换红外光谱(FT-IR)和 bX 射线衍射(XRD)光谱。
Fe3O4(ICCD 文件 76-0958)、GR(SO42−)(ICCD 文件 13-0092)、γ-FeOOH(ICCD 文件 74-1877)、α-FeOOH(ICCD 文件 08-0098)和β-FeOOH(ICCD 文件 08-0098)是海水浸泡环境中的主要腐蚀产物。然而,在生物污损覆盖的界面处,硫酸盐还原菌(SRB)的生长导致了 FeS(ICCD 文件 37-0477)的形成。
三 生物污损/钢界面处的微生物群落
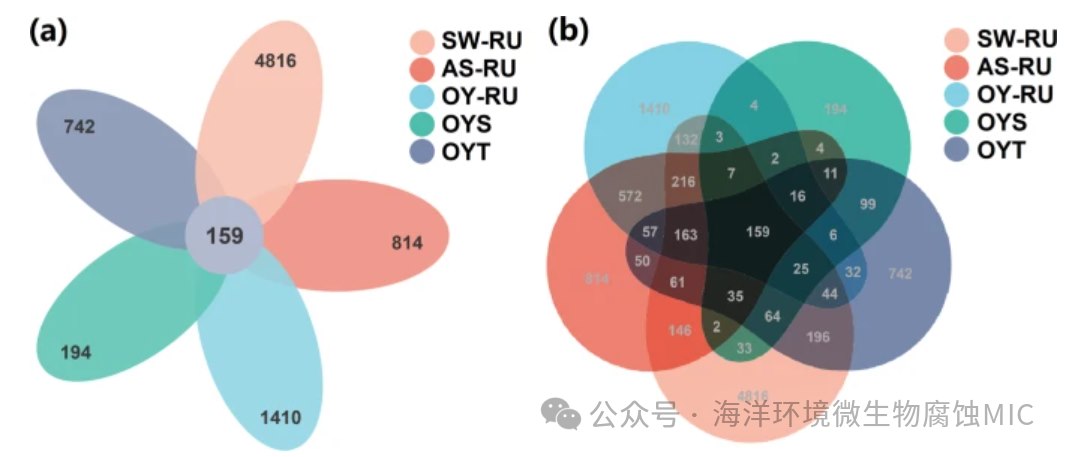
图四:序列分析。a 花形图和 b 维恩图。
使用 Illumina NovaSeq 测序平台,我们从 AS-RU、OY-RU、OYS、OYT 和 SW-RU的样本中获得了总共 911,800 个有效标签和 19,201 个操作分类单元(OUTs,97%相似性),检测到总共 934 个属。锈蚀环境有利于微生物生长,对应微生物群落的高丰度。相比之下,牡蛎分泌物的微生物群落丰度最低。
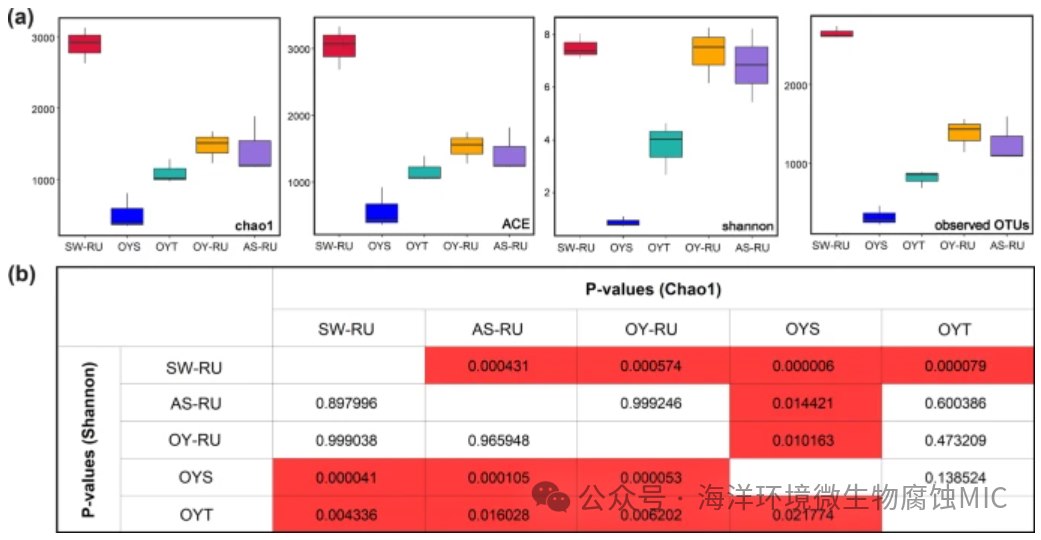
图五:α多样性估计。
Chao1、Ace、Shannon 指数以及按从大到小排序的 OTU 值分别为:SW-RU > OY-RU > AS-RU > OYT > OYS。这些指数反映了群落丰度和多样性的信息,表明在三种锈层样品(SW-RU、OY-RU 和 AS-RU)中,没有大型附着生物覆盖的钢表面上的微生物群落具有最高的丰度和多样性。p 值<0.05,表明锈蚀样本(SW-RU、AS-RU和OY-RU)中的微生物群落更为复杂。随着锈层被大型污损物覆盖,锈层中的微生物群落随氧浓度梯度发生差异变化,这些微生物多样性的差异反映了被覆盖界面的生态系统。
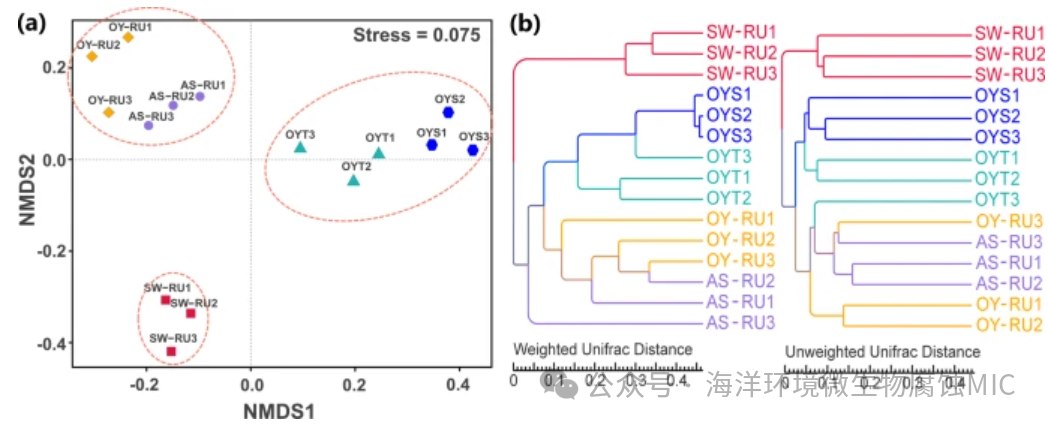
图六:a 基于 Bray-Curtis 距离的非度量多维尺度分析(NMDS)图和 b 基于 Unifrac 距离和加权 Unifrac 距离的 UPGMA 聚类树。
从 NMDS 结果可以看出,样本 OYT 和 OYS 具有明显的相似性,而样本 OY-RU 和 AS-RU 具有明显的相似性。样本 SW-RU 距离较远,这进一步证明生物膜覆盖导致锈层中的微生物群落发生变化。样本 SW-RU 包含其他与其他四个样本共有的微生物群落,这意味着宏观污损/钢覆盖界面特殊的生态环境导致了特征微生物群落的形成,并且宏观污损分泌物也在一定程度上共享了部分微生物群落。此外,由于宏观污损覆盖样本(OY-RU 和 AS-RU)的腐蚀程度大于非覆盖样本(SW-RU),微生物群落的变化与腐蚀进展之间存在相关性。
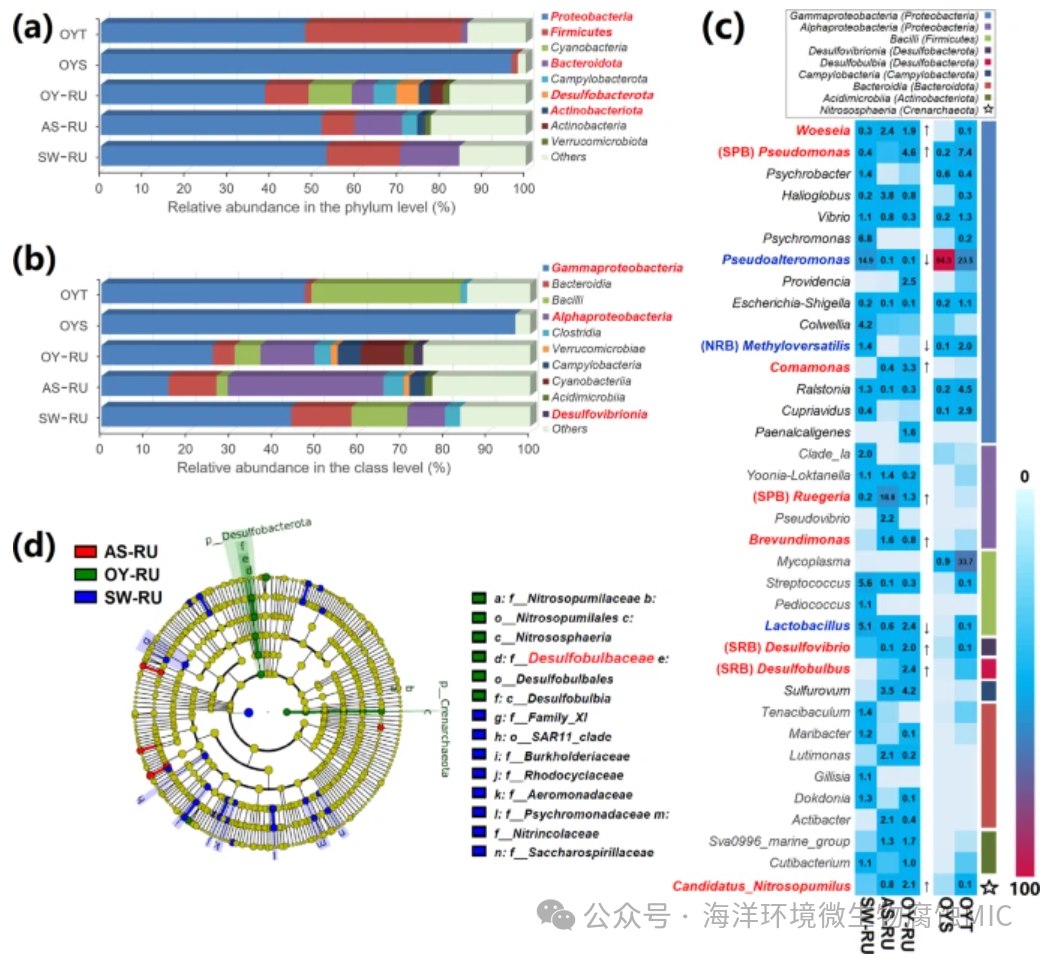
图七:微生物群落的分类组成。 a 门级,b 纲级,c 属级组成分析,基于从样本 OYT、OYS、OY-RU、AS-RU 和 SW-RU 获得的排名前细菌的 16S rRNA 基因序列(相对丰度>1%)。 d 通过LEfSe 分析在锈蚀相关组(OY-RU、AS-RU 和 SW-RU)中鉴别的差异类群系统发育树。
五种样本中观察到的微生物群落的主要门类为: 变形菌门 (38.6–96.7%)、 厚壁菌门 (1.5–96.7%)、 蓝藻门 (−10.2%)、 拟杆菌门 (−10.2%)、 螺菌门 (−5.3%)、 脱硫菌门 (−5.3%)、 放线菌门 (−2.7%)、 放线菌门 (−3.0%)、 疣微菌门 (−1.6%),且它们的相对丰度因样本而异。值得注意的是,OY-RU 含有脱硫菌门和放线菌门 ,牡蛎石灰质壳的覆盖环境导致锈层中变形菌门和拟杆菌门的相对丰度下降,它们被脱硫菌门取代。 这些差异可能受到氧浓度和分泌状态的影响。海水中的钢铁暴露和宏观污损的覆盖导致钢铁表面和宏观污损/钢铁界面之间锈蚀层和生物膜的形成不同。生物膜的一个主要特征是其内部 pH 值、溶解氧(DO)、离子浓度和有机含量与海水存在显著差异。
通过比较锈蚀生物膜样本(SW-RU、AS-RU 和 OY-RU),我们发现属 Woeseia、Pseudomonas(SPB)、Comamonas、Ruegeria(SPB)、Brevundimonas、Desulfovibrio(SRB)、Desulfobulbus(SRB)以及古菌 Candidatus_Nitrosopumilus 最终增加,但属 Pseudoalteromonas、Methyloversatilis(NRB)和 Lactobacillus 随着宏观污损覆盖率的增加而减少。在锈蚀相关样本中,样本 OY-TU 富集了包括 Desulfovibrio 在内的 Desulfurivibrionaceae 科,这进一步证明了其在牡蛎/钢界面微生物群落中的重要角色。
四 宏观污损/钢界面处的潜在功能基因
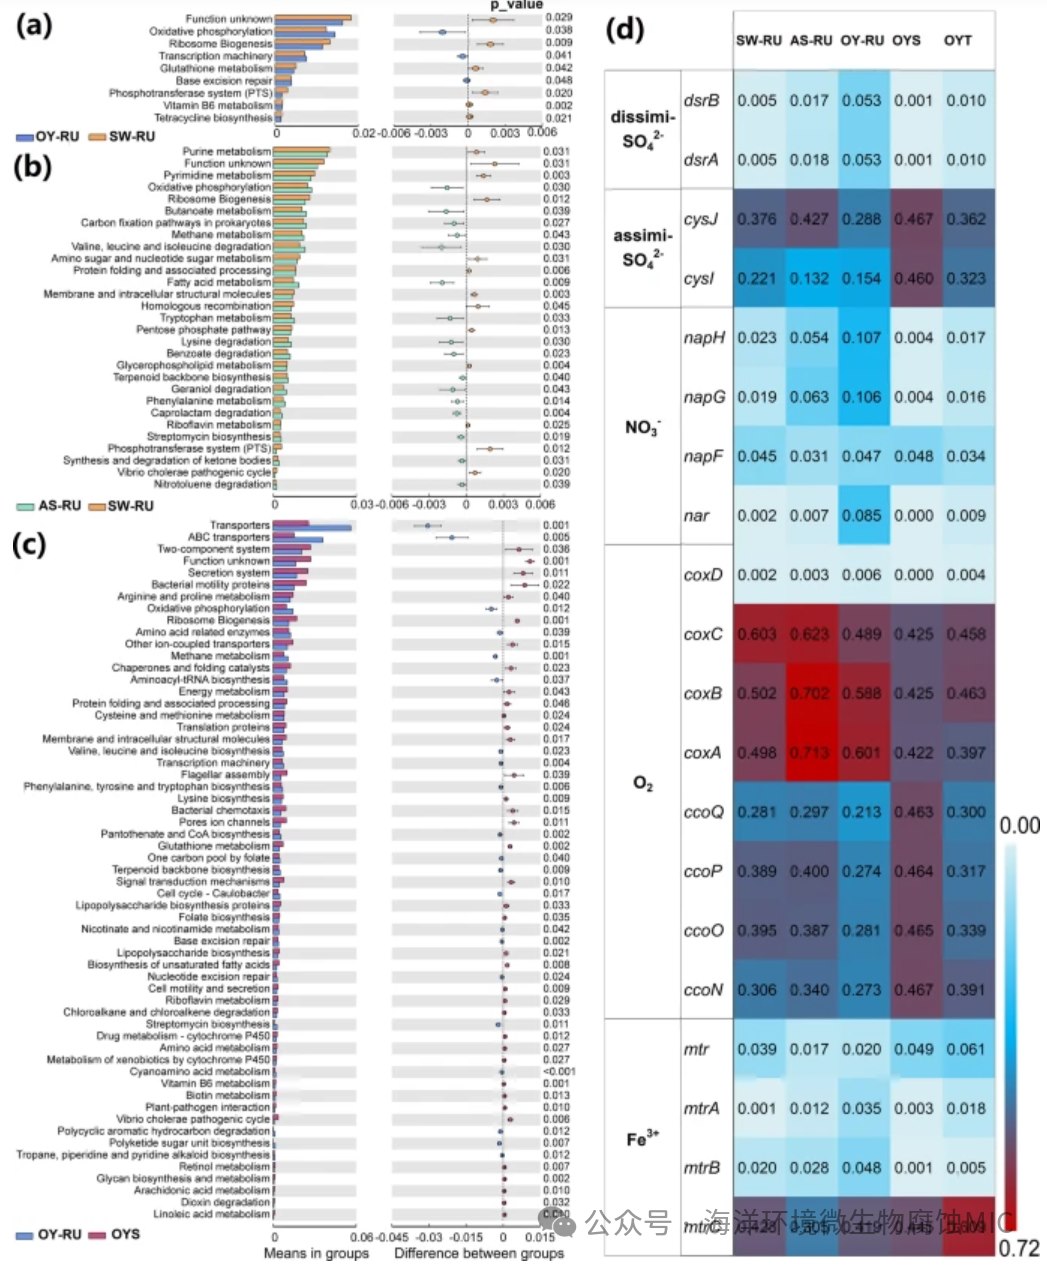
图八:使用 PICRUSt 预测的微生物群落的潜在功能。
分别考虑了牡蛎对界面的影响(a)、海鞘对界面的影响(b)以及牡蛎分泌物的影响(c)。研究发现,宏观污损/钢界面处的微生物群落与没有宏观污损覆盖的钢表面相比,其响应有所不同(a, b)。对于被牡蛎覆盖的界面(a),遗传信息处理、核糖体生物合成和膜运输处理中的磷酸转移系统(PTS)被覆盖的缺氧环境抑制,同时代谢中的氧化磷酸化被强烈刺激;对于被海鞘覆盖的界面(b), 氨基酸代谢(如缬氨酸、亮氨酸和异亮氨酸降解、色氨酸代谢、苯丙氨酸代谢和赖氨酸降解)、脂质代谢脂肪酸代谢、能量代谢(如氧化磷酸化、甲烷代谢以及原核生物中的碳固定途径)、外源化合物生物降解和代谢己内酯降解、类萜和聚酮化合物代谢香叶醇降解,以及其他次级代谢产物的生物合成(如丁胺卡那霉素和链霉素的生物合成以及白花丹素生物合成)被显著刺激,同时遗传信息处理核糖体生物合成和膜运输处理磷酸转移酶系统(PTS)也被抑制。
观察到与好氧呼吸(coxA-D 和 ccoN-Q)、反硝化(nar 和 napF-H)、铁(mtr 和 mtrA-C)、硫酸盐还原(dsrA,B 和 cysI,J)相关的基因在所有样本中都存在。毫不奇怪,与异化硫酸盐还原过程相关的关键基因 dsrA 和 dsrB 在牡蛎覆盖样本(OY-RU)中显著被激活(P < 0.05),这与 AS-RU 和 SW-RU 样本相比,是由于覆盖的缺氧环境(特别是在牡蛎石灰壳覆盖的区域),这与分类学分析一致。相比之下,参与同化硫酸盐还原的关键基因,如 cysI 和 cysJ,在样本 OY-RU 中减少(P < 0.5)。 由于牡蛎/钢界面的硫酸盐消耗量大于海鞘/钢界面,且大于无污损覆盖界面。我们认为,硫酸盐还原菌异化硫酸盐的还原是硫酸盐消耗量重要性的一个原因。微生物同化作用进行的硫酸盐还原可以极大地促进缺氧界面(牡蛎/钢界面)上硫酸盐的消耗。
五 微生物群落作为宏观污损/钢界面腐蚀的关键介质
附着的水母和海鞘导致了被污损钢铁表面的复杂海洋腐蚀,表现为水母/钢铁界面处的局部腐蚀,而海鞘/钢铁界面处则出现均匀腐蚀。锈层成分分析结果显示,除了黄铜矿、白铁矿、针铁矿、磁铁矿和 GR(SO42−) 外,只有在大型污损/钢铁界面处才会生成白铁矿。所有这些表明,在大型污损/钢铁界面处发生了微生物诱导腐蚀(MIC),并且硫酸盐还原菌(SRB)参与了加速腐蚀过程。
当牡蛎覆盖钢表面时,由于硫酸根离子浓度高,SRB(硫酸盐还原菌)容易在这种环境中富集,这通过富集的 SRB和关键的对应基因 dsr(图)得到了证实。牡蛎/钢铁界面锈蚀生物膜中硫酸盐的高消耗和微生物硫酸盐还原,由于石灰质壳的“阴影效应”创造了硫酸盐还原菌的厌氧环境。硫酸盐还原菌诱导的微生物腐蚀促进了腐蚀坑的形成和发展,导致海水硫酸盐的减少,并伴随 FeS 的生成。因此,我们提出在受牡蛎影响的腐蚀过程中,硫酸盐还原菌并非海水中铁的微生物腐蚀发生的主要原因,直到牡蛎幼虫开始在锈蚀的钢铁表面开始定殖。在牡蛎定殖过程中,形成生物膜的属(SPB)Pseudomonas和Ruegeria首先附着在钢铁表面并形成生物膜。在牡蛎定殖钢铁表面后,随着覆盖区域形成局部厌氧区和异质微环境,硫酸盐还原菌和 SPB 相关细菌增殖并促进了锈蚀生物膜的转变。这可以解释为什么厌氧 NO3− 还原相关基因显著富集(P < 0.05), 且 coxC, ccoN, ccoO, ccoP 和 ccoQ 的基因显著减少,同时牡蛎覆盖界面处的硫酸盐还原菌(SRB)富集。这些因素加速了牡蛎/钢界面处的缝隙腐蚀。
然而,这些现象并未导致海鞘/钢界面出现相同的缝隙腐蚀。这可归因于海鞘/钢和牡蛎/钢界面处优势微生物的丰度和氧浓度差异。由于海鞘身体的导电性和离子扩散能力,其覆盖下的环境仍为好氧环境。高氧浓度导致 SRB 活性降低,因此 SRB 很少参与海鞘/钢界面处的微生物诱导腐蚀(MIC)过程。相反,牡蛎/钢界面处的间隙以及分泌物提供的营养物质导致 SRB 活性增强,从而在特定位置引发了严重的 MIC。
参考文献
Wang, Z., Wang, X., Huang, Y. et al. Metagenomic insights into nutrient and hypoxic microbial communities at the macrofouling/steel interface leading to severe MIC. npj Mater Degrad 7, 41 (2023). https://doi.org/10.1038/s41529-023-00365-2.
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。

官方微信
《腐蚀与防护网电子期刊》征订启事
- 投稿联系:编辑部
- 电话:010-62316606
- 邮箱:fsfhzy666@163.com
- 腐蚀与防护网官方QQ群:140808415

“海洋金属”——钛合金在舰船的

腐蚀与“海上丝绸之路”