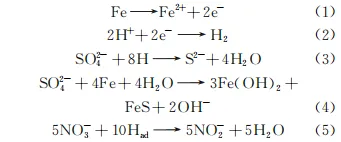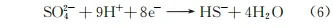油气田管道微生物腐蚀与防护研究进展
2026-10-08 17:00:39
作者:腐蚀与防护 来源:腐蚀与防护
分享至:
管道是油气管输的“血脉”,在全球能源供应链中扮演着不可或缺的角色,其材质一般为碳钢、合金钢和不锈钢,但在管内输送流体与管外介质的共同作用下易发生腐蚀。油气泄漏、爆炸等事故大多是管道腐蚀导致的,且微 生物腐蚀约占总腐蚀的20%。据《中国腐蚀成本》报告,国内每年因腐蚀造成的损失超过2万亿元,已超过GDP的3%。
微生物腐蚀(MIC)主要是指附着在材料表面的微生物因生长代谢直接或间接导致材料腐蚀的过程。微生物可在深水或深层地下、沙漠环境、海洋环境及偏远地区生存,且部分能在高温高压、高盐等恶劣环境中生长繁殖并维持较高的生物活性。它们通常会在管道表面形成生物膜,生物膜的存在可以形成微小电池,使金属表面不同区域形成局部电化学差异,并通过代谢产生酸性物质、硫化物和其他腐蚀性物质,从而腐蚀管道。腐蚀形态包括均匀腐蚀、点蚀、缝隙腐蚀、晶间腐蚀、应力腐蚀开裂(SCC) 、丝状腐蚀、侵蚀腐蚀等,且多种腐蚀形态并存,导致管道穿孔、破裂甚至失效,造成油气泄漏、环境污染。
MIC过程复杂且危害严重,本文总结了油气田管道典型腐蚀性微生物种类及其与腐蚀性因素的交互作用、MIC机理及防护措施,以期为油气田管道微生物腐蚀与防治提供理论依据。
硫酸盐还原菌(SRB) 、硝酸盐还原菌(NRB) 、铁氧化菌(IOB) 、产酸细菌(APB) 、腐生菌(TGB)等是造成油气田管道 MIC 的常见微生物种类,严重的MIC多发生于水环境中,这是因为水环境有利于微生物在金属材料表面吸附并形成生物膜。此外,在适宜微生物生存的条件下,微生物与多因素共同作用造成的腐蚀往往比单一MIC更严重,这些因素主要包括Cl-含量、温度、O2含量、酸性气体(CO2、H2S等)含量、沉积物、电流、磁场等。
1. 1. 1 SRB腐蚀
SRB是油气田中最常见的致病微生物。且 SRB腐蚀占到MIC实例的50%,它可能存在于原油输送、驱油、采出水回注等过程中。常见的菌株有Desulfovibrio Sp. 、Desulfovibrio vulgaris、Geobacter sulfureducens和 Desulfobacterium Sp.等,根据 SRB适宜的生长环境,按温度可将其分为嗜冷菌(10~20℃)、嗜温菌(20~40℃)和嗜热菌(40~60℃);按酸碱度可分为嗜酸菌(pH在2. 9~6. 6)、嗜碱菌(pH在6.9~9.9)和嗜中性菌(pH在 5. 7~8. 2)。SRB能够利用硫酸盐或其他形式的氧化态硫化物作为电子受体,将SO42- 逐步还原为一系列中间产物,最终生成硫化物(如H2S、S2- 等)。SRB可与基体材料表面发生相互作用,且SRB腐蚀一般不单独存在,而是与其他腐蚀因素(如上述提到的Cl-含量、温度等)共同作用,加剧管道腐蚀。
(1) Cl- 含量影响
微生物因其自身代谢活动会在金属表面形成生物膜,而Cl-会破坏生物膜,增加金属的应力腐蚀(SCC)敏感性及点蚀风险。辛征等研究发现,当Cl-质量浓度为30g/L时,316L不锈钢表面附着的细菌数量最多,最适合SRB生长,但SRB形成的生物膜不足以抵挡腐蚀性物质的进一步侵蚀,且会促进钢表面钝化膜的破坏和溶解,从而导致钢的耐蚀性降低;当Cl-质量浓度超过100g/L时,SRB基本不生长,此时SRB对316L不锈钢腐蚀的影响变小。Xie等也发现,SRB数量与Cl-含量之间存在极值问题,即在Cl-质量浓度为20g/L时SRB数量最多;且随着Cl-含量的增加,X70管线钢的断裂形式由韧性断裂向脆性断裂转变,裂纹和点蚀坑的形成与扩展加速,当Cl-质量浓度为30g/L时,其与 SRB的协同作用最强,阳极溶解速度最快,SCC敏感性最高。
(2) 温度影响
温度会影响微生物的生物活性及环境中腐蚀性离子(如Cl-、S2-等)的活跃度,但由于环境介质的复杂性及SRB种类的不同,温度对SRB腐蚀的影响各异。一般来说,高温(50℃以上)会促进嗜热型SRB吸附在钢基体表面并产生大量H2S,导致管材出现大量蚀孔,均匀腐蚀速率增大。裴文霞等研究发现,40℃时SRB大量繁殖且生长迅速,使得X65钢的点蚀坑深度及点蚀速率均达到最大值,分别为32.95μm和0.601mm/a;当温度为60℃时, Cl-、S2-等变得更加活跃,它们与嗜热型SRB以及CO2共同作用,导致钢基体表面产生大量腐蚀产物,如FeS、FeCO3,使均匀腐蚀速率达到最大值,为0.05815mm/a。然而,李昊宸等研究发现,SRB在30℃时的活性高于50℃时,且其生物膜中的细胞密度更大,腐蚀形成的FeS加速了 X80钢的电化学腐蚀速率,从而导致该钢在30℃时的腐蚀速率更大、
(3) O2 含量或溶解氧(DO)影响
尽管大部分SRB是严格厌氧微生物,但部分属种能在适宜O2含量下存活,甚至生长、繁殖。 因此,不同O2含量下SRB腐蚀程度亦存在较大差异。Wan等研究发现,随O2含量降低,SRB活性增强、生长更迅速,体系中 CS2- (硫化物阴离子含量)增大,pH降低,Q235钢的开路电位更负、阻抗值更大;含O2环境中Q235钢表面形成的生物膜均匀但疏松,而含N2环境中形成的生物膜较为致密,一定程度上保护了钢基体免受腐蚀,这与电化学测试结果一致。Wu等研究发现,高含量DO会抑制SRB的生长繁殖,不会导致Q235钢发生MIC;若存在需氧假交替单胞菌,它可消耗海水中的DO,形成低氧甚至厌氧环境,从而使厌氧脱硫弧菌进行一系列生命活动并引发 MIC。
(4) 酸性气体(CO2、H2S等)影响
CO2在有水的环境中会形成弱酸,酸性环境通常会降低SRB的活性,从而在一定程度上减缓SRB腐蚀。然而,当其他有机碳源不足时,CO2可作为SRB生长代谢的迟效碳源,支持SRB的二次生长,这种情况下可能会加速管道腐蚀。李霄等研究发现,L360钢在模拟SRB和CO2环境中发生膜下腐蚀,腐蚀速率为1.3165mm/a,最大点蚀速率为2.805 mm/a,腐蚀程度极为严重,推测在该腐蚀过程中CO2的主要作用是为SRB生长提供碳源。另外,随管道内CO2分压的升高,局部环境酸性变强,可抑制微生物的生物活性并破坏形成的生物膜,减缓MIC,但会加剧CO2腐蚀,使管道同样面临严重腐蚀威胁。
H2S不仅会影响SRB的活性,还能促进SCC裂纹的形成,加速钢材腐蚀。 H2S的来源可分为生物H2S及非生物H2S,这两种H2S与管材表面反应形成FeS的机制虽不同,但实际研究过程中一般不严格区分其来源。敬加强等研究表明,SRB在代谢过程中产生较多的H2S,导致Q235钢出现SCC和局部腐蚀,腐蚀26天后的腐蚀速率(0.101 mm/a)是不含SRB时(0.016mm/a)的6倍多。另外,H2S含量也是影响SRB腐蚀能力的一个重要因素,过量的H2S会对SRB细胞产生毒害作用,导致细菌活性下降,数量减少,进而减弱其腐蚀能力;反之,随着H2S含量的降低,SRB数量增多,腐蚀能力也增强。
(5) 沉积物影响
沉积物的形成一般发生在原油输送过程中,原油中的重质组分等会在管道低洼处沉积而形成沉积层,为SRB菌落提供了良好的生存环境,从而引发MIC。Xu等研究发现,X60钢在含SRB油泥中的腐蚀速率(119.2μm/a) 比单一油泥(30.6μm/a)或单一SRB溶液(76. 6μm/a)的更高,且腐蚀坑更宽、更深,这是因为SRB代谢产生的H2S被阻挡在油泥内部,使得油泥酸化,从而加剧腐蚀;Yuan等研究发现,在X65钢管道严重腐蚀区域,壁厚减薄30%及以上的部分约占18%,腐蚀产物/沉积物主要成分为FeCO3、FeS、FeO(OH)以及 CaCO3等化合物;另外,腐蚀产物/沉积物下方形成的的厌氧区域适宜SRB生长与繁殖,且有大量SRB附着于此,使管道发生严重的MIC。可见, X65钢管道发生严重局部腐蚀的主要原因是CO2腐蚀、沉积物累积以及SRB活动的协同作用。
(6) 电流影响
电流不仅影响SRB的新陈代谢及微生物膜在钢表面的吸附能力,还会影响腐蚀过程中阳极反应速率,进而影响管道腐蚀。Cai等研究发现,交流电流密度为0~100A/m2时固着细胞数量(均大于105cell/cm2)大于交流电密度为200A/m2时(小于103 cell/cm2),适宜的电流密度促进了SRB在钢表面附着并形成生物膜,加速了腐蚀过程中的阳极反应速率,进而使腐蚀产物膜脱落,在交流电流密度为100A/m2时,X80管线钢的腐蚀最严重,腐蚀速率达0.624 mm/a。卿永长等研究发现,交变电场会降低 SRB微生物膜在Q235钢表面的吸附能力,加速微生物膜脱附。腐蚀2天时,交流电流与 SRB共同作用形成的活性微生物膜抑制金属腐蚀;而腐蚀10天时,微生物膜失去活性并开始脱落,且 SRB的生理代谢提高了Q235钢局部腐蚀敏感性,其与交流电流协同作用加剧了Q235钢腐蚀。
(7) 土壤环境影响
在土壤环境中,管道外壁受土壤含水率、酸碱度、离子和矿物质等因素的影响,由于土壤环境的复杂性,SRB对管道腐蚀影响差异较大。Wasim 等对比发现,铸铁在含SRB的土壤环境中腐蚀1 a的腐蚀速率 (0. 310mm/a) 是 其 在 培 养 基 环 境中(0.104mm/a)的3倍,最大凹坑深度是培养基中的2倍。这是因为土壤环境复杂,多种因素交互作用导致铸铁表面未形成有效的FeS保护膜,铸铁持续受到SRB腐蚀;而在含SRB的培养基中,随着腐蚀时间的延长,SRB代谢产生的H2S与金属反应形成的FeS膜逐渐变得致密,保护了钢基体;此外,在腐蚀0. 5年1年况下,0%含水率土壤中的SRB腐蚀速率均低于20%含水率。王丹等研究发现,鹰潭、沈阳、大港土壤(分别为酸性、中性、碱性土壤)三种土壤环境的酸碱性及SRB活性与数量均不同,在X80管线钢表面所形成的生物膜致密度也不同,且随土壤碱性的增强,点蚀坑数量依次增多、密度依次增大,腐蚀速率依次增大,分别为 8.3,12.7,18.5 dm2/a。
(8) 磁场影响
磁场既可调控金属介质中的电子转移动力学过程,同时能够改变腐蚀产物膜的物相组成,最终影响产物膜的致密程度与防护性能。除此之外,磁场还可调控SRB的生理代谢行为,进而改变微生物活性与腐蚀作用强度。不同的磁场强度对金属材料微生物腐蚀的影响亦有差异。Gao等研究发现,在模拟土壤溶液中SRB数量随磁场强度的增大而降低,磁场对X100钢腐蚀表现出抑制效应,且抑制作用随磁场强度提升呈先增强后减弱规律。0mT磁场强度下,X100钢表面膜形貌表现为多孔且存在裂纹;0~ 5 mT磁场强度下,磁场既可抑制SRB腐蚀,又可通过磁化腐蚀产物促进形成致密产物膜,5 mT时腐蚀速率最低(0.14mm/a);磁场强度超过 7 mT时,产物膜结构遭到破坏,出现破裂、剥落,腐蚀进程随之加剧。然而宗月等针对海水体系下X100钢开展研究得到相反结论:在 0,4,8, 12mT磁场强度下,钢材抗SRB腐蚀能力随磁场强度升高而提升。这是因为磁场强度增强使体系电荷转移电阻增大、腐蚀电流密度减小;外加磁场不仅抑制SRB腐蚀,还促进形成致密产物膜,并弱化点蚀损伤,抑制钢材腐蚀。
(9) 脱黏涂层影响
涂层存在瑕疵或破损从而发生剥落,腐蚀性离子会渗入涂层与钢基材之间,腐蚀基体。Wei等研究发现,在距离X80管线钢脱黏涂层缝隙越近,红壤溶液中SRB数量越多,缝隙处SRB数量比距离缝隙250 mm处高出近一个数量级。缝隙界面生成致密腐蚀产物膜,基体表面分布大量花朵状 FeS、Fe3O4等腐蚀产物及附着菌体。随缝隙深度增大,Fe溶解形成的腐蚀产物减少,产物膜趋于疏松多孔、厚度减小,点蚀坑尺寸减小,腐蚀速率逐步下降,相关腐蚀机理如图1所示。
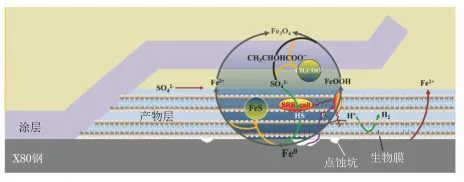
图1 X80钢在含SRB红壤环境中的 MIC示意图
1. 1. 2 NRB腐蚀
NRB作为另一类重要的腐蚀性微生物,在油气管道环境中广泛存在,影响多种金属材料的腐蚀行为。该类微生物以硝酸盐为电子受体,利用有机物或无机物作为电子供体,将硝氮还原为氨氮,从而获取能量。常见的NRB菌株包括 Pseudomonas aeruginosa、Halomonas titanicae 和 B. subtilis等。在特定的环境中,NRB与SRB并存,且NRB在一定程度上可抑制 SRB生长和繁殖,这是因为NRB会消耗储层中的有机物。因此,工业上常通过注入适量硝酸盐来抑制SRB生长,而硝酸盐可能会引起NRB大量繁殖,从而导致油气管道发生NRB腐蚀。
NRB可在金属表面形成生物膜,生物膜虽能阻碍阳极反应,但整体上会加速腐蚀,其作用机制与NRB代谢产生的亚硝酸盐(NO2-)含量密切相关。Liu等研究发现,当体系NO2-浓度≤10 mmol/L时,X80管线钢的腐蚀质量损失随浓度梯度增大而上升;NO2-浓度超过6mmol/L时,浓度梯度主导腐蚀加速过程;低于6mmol/L时,胞外电子传递(EET)占据主导地位。Duan等研究发现,随腐蚀时间延长,模拟酸性红壤中枯草杆菌(B. subtilis)在X80管线钢表面形成的生物膜逐渐增厚、覆盖面积扩大。生物膜对基体具有保护作用,腐蚀14天后,未接种NRB试样的腐蚀速率约为接种NRB试样的4.5倍,说明NRB可抑制腐蚀进程。但生物膜能促进局部电子传递,引发点蚀,接种NRB试样的腐蚀坑深度(46.1μm)为未接种试样(15.7μm)的3倍。综上,NRB对X80管线钢的腐蚀表现出双刃剑效应。
1. 1. 3 IOB腐蚀
IOB广泛分布在土壤、海洋和油气田等环境中,该类微生物以 CO2为碳源,O2为最终电子受体,通过氧化Fe2+生成Fe3+获取代谢能量。IOB对Fe2+的催化氧化速率远高于非生物化学氧化速率,能够加速金属材料腐蚀,代表性菌株包括A. ferrooxidans和Gallionellaferruginea。
Chandrasatheesh等研究发现,Cl-含量越高,IOB活性及数量越低;在含IOB的培养基中, Cl-质量分数为1%时,316L不锈钢表面生物膜下腐蚀坑直径为80~90μm;Cl-质量分数为3%、6%时,仅出现浅蚀坑和微小蚀坑,说明IOB生成的生物膜是316L不锈钢表面点蚀坑形成及扩展的关键因素。张丽等研究发现,IOB增强了20钢及其表面沉积层之间的电偶效应,沉积层覆盖试样的腐蚀坑比裸钢更明显,局部腐蚀更加严重。吕亚林等研究发现,X80管线钢在含IOB体系中形成疏松生物膜,在无IOB体系中形成致密生物膜, IOB可加速 X80管线钢腐蚀。
IOB形成的生物膜对腐蚀进程存在双重作用,在特定腐蚀阶段亦可表现出缓蚀效果。Liu等研究发现,培养至21天时体系中营养物质逐渐被消耗,IOB代谢活性降低,Q235钢表面腐蚀产物增多,生物膜中有机物含量降低,无机物含量升高,形成致密膜层,能够阻碍腐蚀性物质对基体的侵蚀。一旦生物膜发生脱落,碳钢腐蚀则会再次加剧。
1. 1. 4 APB腐蚀
APB通过代谢生成的乳酸、碳酸等多种有机酸和无机酸,使油气管道环境pH下降,金属不断溶解,造成严重的点蚀和缝隙腐蚀,常见菌株有Citrobacterfarmeri AcidithiobacilluscaldusSM- 1等。
Tian等研究发现,APB生物膜下的pH比溶液低,Citrobacterfarmeri基于代谢作用形成酸性环境,导致Q235钢发生严重点蚀并引发缝隙腐蚀;另外,随腐蚀时间延长,Q235钢表面逐渐被Citrobacterfarmeri形成的生物膜(Fe3O4等代谢产物、细菌细胞)覆盖,膜内外存在氧浓度差,且Fe3O4使厌氧区阳极腐蚀电流更高,从而加速 Q235钢的腐蚀。
在油气田管道环境中一般存在两种或两种以上微生物,其相互作用对管道腐蚀的影响亦有差异。 SRB与 IOB、SRB与TGB等菌群协同作用时,一种微生物的代谢为其他微生物的生长繁殖提供有利条件,二者形成共生体系,共同加剧管道腐蚀,而 SRB与NRB之间存在拮抗作用,菌群通过竞争养分或依靠代谢产物相互抑制活性,从而减缓管道腐蚀。
1. 2. 1 SRB和 IOB腐蚀
Xu等研究发现,无菌介质中316L不锈钢没有点蚀,而在含SRB/IOB/SRB+IOB介质中,不锈钢表面出现点蚀,且SRB和IOB协同作用引起的点蚀比单一SRB或IOB更严重。Lu等研究了SRB和IOB共存海水中X65钢的腐蚀行为,结果显示,IOB通过消耗环境中的O2为SRB创造了厌氧环境,这有利于SRB的生长、繁殖,SRB通过其代谢活动释放出大量腐蚀性H2S,导致生物膜局部区域pH显著下降,从而引发严重局部腐蚀;另外, X65钢表面与非生物腐蚀产物、Cl-以及细菌细胞及其代谢产物之间的相互作用导致钝化膜受损加剧,进而加速了点蚀扩散。然而,杨旭等认为,X100管线钢母材和焊缝断口在无菌环境中均为韧性+脆性混合型断口,且断口周围出现大量SCC裂纹;而在含SRB+IOB环境中断口主要呈现较小且深的韧窝形貌,未发现明显SCC裂纹,其原因可能是SRB和IOB生成的生物膜与腐蚀产物结合形成致密的保护层,阻止了腐蚀性介质与X100管线钢基体接触,从而减轻应力腐蚀程度。
1. 2. 2 SRB和 NRB腐蚀
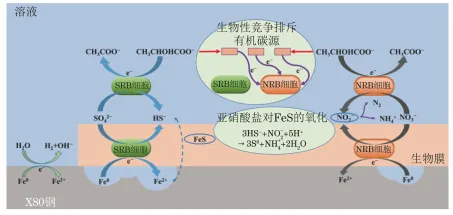
与SRB和IOB协同腐蚀不同的是,SRB和NRB共存对腐蚀起到拮抗作用。NRB对SRB诱导的腐蚀有明显的抑制作用,其原因是NRB代谢产生的亚硝酸盐会抑制SRB的活性,防止SRB在沉积物下大量聚集、生长和繁殖。油气田中经常采用采出水回注的方式提高原油采收率,这一过程往往会引入SRB,为缓解SRB及其代谢产物造成的腐蚀问题,通常通过向地层水中加入适量的硝酸盐来加速NRB的生长,SRB的生长受到抑制,从而起到减缓腐蚀的作用。Fu等研究了土壤溶液中Desulfovibrio desulfurican和Pseudomonas stutzeri共存对X80钢腐蚀行为的影响,发现NRB对SRB腐蚀起抑制作用。如图2所示,由于硝酸盐还原产生的ΔGθ(标准吉布斯自由能)值比硫酸盐还原产生的ΔGθ 值更负,这使得NRB在能源(如 Fe、有机碳源等)或电子供体(如乳酸等)竞争方面比SRB更具优先性,从而导致SRB可利用的营养物质减少,减缓了SRB的新陈代谢。另外,NRB引起点蚀的严重程度最小,其次为SRB和NRB,最后为SRB。
1. 2. 3 SRB和 TGB腐蚀
SRB和TGB共存时环境复杂,且一般存在 CO2,使得CO2+SRB+TGB共同腐蚀比单一 CO2、SRB或TGB腐蚀更加严重,但这方面的研究还较少。周杰等研究发现,CO2、SRB和TGB共同腐蚀比单一CO2腐蚀更加严重,这是因为CO2与 Fe基体反应产生的FeCO3膜为微生物提供了生长繁殖的理想环境,SRB、TGB与FeCO3相互作用形成的腐蚀共生体系,促进了微生物在产物膜下大量聚集;电化学分析表明,CO2+SRB+TGB体系中碳钢自腐蚀电位降低、自腐蚀电流密度增大,这促进了CO2腐蚀的阴极氢去极化过程,进一步加剧了腐蚀。
目前,众多学者已经对油气田管材MIC机理有了较为深入的研究,从不同角度进行了概述,如生物膜、生物学能量、电化学、动力学等。但在油气田特殊环境(厌氧或无氧)中,管材的腐蚀过程及机理尚不清晰。
2. 1. 1 阴极去极化(CDT)及代谢产物腐蚀机理
在厌氧条件下,CDT理论是被众多学者认可的腐蚀机理,该机理是指微生物利用氢化酶来消耗阴极氢并将其用于自身代谢。SRB能够利用氢化酶将SO42-还原为H2S,阳极金属离子逐渐溶解而失去电子,继而阴极氢得到电子完成去极化过程,间接加速腐蚀进程,反应如式(1) ~ (4)所示。除SRB外,NRB也可进行与 CDT 类似的腐蚀过程,Liu等发现,NRB能够通过甲醛脱氢酶的作用,去除X80管线钢表面吸附的H[反应式(5)] ,这一过程有助于增大阴极极化的电流密度,进而增加氢脆风险,并使 X80管线钢的阴极安全电位从- 0. 79~ -1. 08V缩减至-0.79~-0.86V(相对于饱和甘汞电极),从而更易引发点蚀。
微生物的代谢过程与CDT往往同时进行,且代谢产物对油气管道造成的腐蚀也不可忽视。SRB可以利用SO42- 、乙醇或乳酸等生成的H2S、CO2 或乙酸,使钢基体所处环境 pH降低;它还可以附着在油气管道表面并生成生物膜,促进FeS的生成,而FeS可以传递金属表面的电子,并作为阴极加速金属腐蚀,进而加速全面腐蚀。
2. 1. 2 电偶腐蚀、缝隙腐蚀及氧浓差电池腐蚀机理
微生物代谢产物与金属反应生成的腐蚀产物在钢表面沉积,并形成与金属基体相耦合的原电池,引发电偶腐蚀。
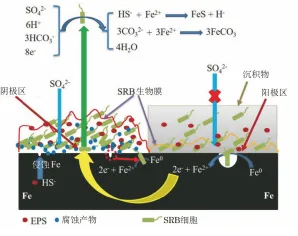
在厌氧条件下,Liu等研究了SRB对Q235钢电偶腐蚀的影响,结果表明,腐蚀7天时,在含SRB介质中测得的电偶电流密度(约4.0μA/cm2)是不含 SRB(约0.6μA/cm2)的 6.7倍,原因是SRB诱导生成的FeS或环境中其他腐蚀产物会在钢表面沉积,并形成与金属基体相耦合的原电池,沉积物下钢作为阳极,裸钢作为阴极,从而加剧点蚀并导致局部腐蚀,SRB增强电偶腐蚀机理如图3所示。然而,Liu等在研究海水中 Pseudomonas stutzeri对沉积物覆盖下管线X80钢与裸钢腐蚀行为的影响时获得相反的结论,即裸钢在无菌条件下的腐蚀速率[(0. 365±0. 021) mm/a]大于在有菌条件的[(0. 230±0. 001) mm/a] ,且丝束电极电流分布显示,有 菌 的 阳 极 电 流 密 度 小 于 无 菌, 表 明 P. stutzeri可以降低沉积物覆盖钢和裸钢区域之间的电流效应,进而抑制 X80管线钢腐蚀。
在有氧条件下,油气田管道环境中存在大量的好氧型细菌,好氧菌能够通过自身代谢作用消耗生物膜中的O2,导致膜内外O2含量存在差异,从而形成氧浓差电池,并引发点蚀与缝 隙腐蚀。 Zhu等研究发现,IOB在X80管线钢表面会形成较厚且不均匀的腐蚀产物膜,其代谢作用降低了膜内的氧含量,形成氧浓差电池,使得X80管线钢在腐蚀15d时点蚀坑深度达到 79. 1μm。Wu等研究发现,有菌环境中316L不锈钢的阳极腐蚀电流(约5.6×10⁻⁸A)高于无菌环境(约 7.5× 10⁻⁹A),此外,在有菌条件下,缝隙宽度为90~ 150μm时缝隙腐蚀较严重,缝隙宽度大于150μm的区域,阳极电流仍达到4. 5×10⁻⁸ A,这说明SRB可能会增加缝隙腐蚀的宽度范围。
在厌氧条件下, CDT引发MIC依赖氢化酶的作用, 而没有氢化酶 的 SRB 仍然可 引起严重 的MIC。基于这一问题,Gu等首次提出了生物催化硫酸盐还原(BCSR)理论。
2. 2. 1 基于生物能量学的 MIC理论
当环境介质中碳源(如乳酸)充足时,乳酸会优先成为 SRB的电子供体,引起金属的阴极去极化反应;而当体系缺乏碳源时, SRB为维持自身能量代谢,可将单质铁作为电子供体, 同时还原 SO42- , 以获取自身新陈代谢所需的能量,从而加剧腐蚀,反应如式(1) 、(6)所示。
Xu等研究发现,90% 的 碳 源 缺 乏 时, Desulfovibriovulgaris引起 C1018钢的点蚀坑深度最深,为10μm;而 99%的碳源缺乏引起钢的质量损失速率最大,为 0.0019g/cm2 。Cui等 研究也表明,SRB在0%和10%碳源介质中对 X80钢造成的腐蚀比在100%碳源介质中造成的腐蚀更加严重。
同样地,生物催化阴极硝酸盐还原(BCNR)也适用于解释NRB引起的 MIC,其原理与 BCSR相似,即 NRB可从铁基体表面直接获取电子,然后其经电子传递系统通过外细胞膜转运到NRB细胞质中进行生物催化硝酸还原,反应如式(1) 、(7) ~ (9)所示。在传统的电化学系统中,阴极还原反应需要外加电势来推动电子的转移。然而,在生物电化学系统中,生物催化剂(酶)能够通过催化作用降低反应的能垒,从而降低反应所需的电势,这使得生物电化学系统能够在较低的电位下进行有效的阴极还原反应,从热力学的视角来看,铁氧化耦合硝酸盐还原是一个释放能量的过程,但生物条件比非生物条件能量释放更为迅速,进而加速了腐蚀进程。
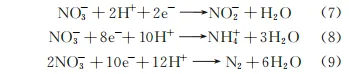
Jia等研究发现,在腐蚀7天时, 100%、10%和 0%有机碳源中的细菌引起 C1018钢的最大点蚀坑深度分别为 5. 4, 10. 6, 17. 0 μm,腐蚀速率分别为1. 5,2. 1, 3. 1 mg/cm2,可见, 在减少碳源的条件下Paeruginosa对C1018钢的腐蚀程度最严重。
2. 2. 2 基于生物电化学的 MIC理论
基于生物电化学提出了胞外电子传递理论,其指微生物将金属作为电子供体,经过一系列氧化还原反应,电子被逐步传递至末端电子受体,实现代谢活动并生成硫化物,从而加速油气管道腐蚀。在缺少碳源的环境中,SRB会形成菌毛附着在金属基体表面进行电子转移,以完成硫酸盐还原为SRB提供能量。一般认为 SRB代谢产生的生物性 H2S是引发 MIC 的诱因。但最新的 SRB腐蚀研究表明,SRB形成的生物膜通过 EET从金属铁上获取阴极电子,供自身代谢产能,该过程才是造成 MIC的主要原因。EET 主要分为两类途径 : 直接电子转移(DET)和介导电子转移(MET) 。
DET依赖于膜外细胞色素 c、导电磁性纳米线等膜蛋白与金属表面直接接触,促进SRB进行硫酸盐还原以维持其新陈代谢。Tang等研究发现,细胞色素 c的存在增加了316L不锈钢点蚀坑密度与 最 大 点 蚀 坑 深 度。Alrammah 等在Desulfovibriovulgaris培养基中加入40 mg/L的纳米线培养7天后发现,C1020钢的质量损失相比不加入纳米线时增加了45%,腐蚀坑深度增加了57%。
MET可利用可溶性电子载体,将电子传递到SRB的细胞呼吸链进行硫酸盐还原。当核黄素或黄素腺嘌呤二核苷酸作为SRB的可溶性电子载体时,可以增强生物膜的电活性,减少反应所需的活化能,进而促使 SRB从金属表面获取电子,加速金属腐蚀。Jin等研究发现,在培养基中添加核黄素后,G sulfurreducens在 316L不锈钢上引起的凹坑深度 (4. 6 μm)是不添加时 (3. 6 μm) 的1. 3倍, 自腐蚀电流密度[(1. 1±0. 1) μA/cm2]是不添加时[(2. 2±0. 3) μA/cm2]的 2倍。付磊等研究也发现, 当体系中加入核黄素后, SRB腐蚀导致X80管线钢点蚀坑深度增加、腐蚀速率增大。
在油气田中,常使用一些生物杀菌剂来抑制环境介质中微生物的生长或杀灭微生物,将杀菌剂与缓蚀剂或其他试剂复配使用效果更佳。 魏晓静等将双癸基二甲基氯化铵(DDAC)与 D-酪氨酸、 D-色氨酸、D-缬氨酸三种氨基酸按照一定比例复配使用,发现在 60 ℃环境中杀菌 10小时时的杀菌率在99%左右,在 40~70℃环境中杀菌12小时,此复配杀菌剂仍能维持较好的杀菌效果, 同时具备良好稳定性。Chen等发现,硫离子响应型BTA-HMSN/ZIF-8-MNZ纳米胶囊的质量浓度为250 μg/mL时,抗菌效率接近100%,通过失重计算发现,Q235钢在腐蚀环境中浸泡8小时时的缓蚀效率最高,达到89. 23% 。Wang等合成了一种环保型广谱抗菌防腐蚀缓蚀剂 RTIQAS,研究发现, 当 RTIQAS添加 量 为50mg/L 时, 由 D.vulgaris 和B. licheniformis引起 X80管线钢 MIC的极化电阻分别增加了61倍和4倍, 自腐蚀电流密度分别降低了94%和 84%,表现出良好的杀菌缓蚀效果;另外,分子模拟结果也表明,RTIQAS分子吸附在 X80管线钢表面,并在碳钢上形成了缓蚀屏障,减缓了腐蚀进程。Okoro[78] 研究发现,在0. 6%(质量分数)四羟甲基硫酸磷(THPS)下,SRB将硫酸盐还原为硫化物的能力几乎被完全抑制。
微生物可通过多种途径实现腐蚀抑制:细菌呼吸作用消耗体系中的去极化剂O2;细菌代谢分泌物在材料表面生成保护层(如EPS) ;以及借助生物矿化构建防护层,上述方式均能够有效阻滞腐蚀发展。
Bacillusfirmus(一种油藏芽孢杆菌菌株)产生的抗菌物质能够有效抑制 SRB活性,这有助于减少SRB的数量, 从而减缓 MIC。Qiu等研究表明,在仅存在 SRB的环境中,由于SRB能够将硫酸盐还原为硫化物,环境中硫酸盐质量浓度从 113mg/L降至 77.1 mg/L;而 在 噬 菌 蛭 弧菌(B. bacteriovorus) 和 SRB 共 存 环 境 中,由于B. bacteriovorus能够捕食SRB,腐蚀 7天后硫酸盐质量浓度稳定在 94mg/L,X70管线钢的腐蚀速率从19.17mg·dm-2·d-1降至3. 75mg·dm-2·d-1。
采用特殊的抗菌和防腐蚀材料,能够有效延长管道使用寿命。如一种新型含1%(质量方式) Cu的 X80管线钢基体中分布着纳米级富铜析出相,力学性能优于传统 X80管线钢,在时效状态下对SRB和铜绿假单胞菌均表现出较好的抗菌能力,且其抗点蚀 性 能 显 著 优 于 传 统X80管线钢。 Song等制备了添加Cu和Ce的316L不锈钢,发现在Cu、Ce添加量分别为2. 5%、0.18%时表现出最佳的抗SRB腐蚀性能, 21天腐蚀速率较不添加Cu、Ce时降低了0. 004 mm/a。
3. 4. 1 环氧涂层
有机硅改性的环氧涂料表现出优异的耐酸和SRB腐蚀性能,可作为石油勘探等行业中输送管道的防护涂料。Jiang等制备 了 TCSMSNs@ TA-FeIII 纳米填料,可有效保证 TCS(杀菌剂)在不同 S2-含量下的受控释放,其在含 SRB溶液中浸泡后的阻抗模|Z|0. 01Hz 值达到 1. 89×106 Ω·cm2,比无涂层增加了2个数量级,这说明涂层抑制了 SRB引起的S2-腐蚀过程,从而使抗菌性能更加持久。
3. 4. 2 铁基非晶涂层
与传统的晶态合金涂层相比,铁基非晶涂层具有更高的硬度和更好的耐腐蚀性能,能够更好地保护金属表面免受腐蚀和磨损。Zhang等首次报道了通过高压电弧炉工艺制备的铁基非晶涂层具有阻挡电子转移和抑菌作用的抗 SRB腐蚀性能,研究发现,其在含 SRB的介质中具有较好的抗腐蚀性能和阻止 SRB接收电子的能力,且涂层表面生物膜较薄,固着和浮游 SRB细胞数量均减少,表现出良好的抗菌效果,可有效防止X80管线钢点蚀和溃疡状腐蚀的发生。
3. 4. 3 智能纳米材料超疏水涂层
CuO纳米颗粒能够抑制SRB在钢表面形成生物膜,具有优异的抗微生物腐蚀性能。Zhu等制备了引入CuO纳米颗粒的超疏水、高耐蚀性 Ni涂层,在 CO2、Cl- 和SRB共同腐蚀15天涂层X65管线钢的腐蚀速率(0.531 mm/a) 是有涂层(0.222mm/a)的2.4倍,该涂层在保护油气管道免受MIC方面具有重要的工程应用潜力。
3. 4.4 石墨烯涂层
石墨烯可从物理和化学两个层面协同发挥抑菌效果。Chilkoor等制备了马来酸酐功能化石墨烯纳米填料环氧涂料(MAGE),研究发现, 在非生物(3.5% NaCl)和侵蚀性微生物(SRB)环境中,与1018裸钢相比,MAGE涂层将钢的耐腐蚀性提高了9~10个数量级,是环氧涂层的5倍,并在 SRB生物膜下保持稳定耐腐蚀性能长达40天。
免责声明:本网站所转载的文字、图片与视频资料版权归原创作者所有,如果涉及侵权,请第一时间联系本网删除。